La lyse cellulaire par ultrasons consiste à rompre l’enveloppe des cellules grâce à l’énergie mécanique de la cavitation, afin d’en libérer le contenu. Protéines recombinantes, enzymes, acides nucléiques, pigments ou lipides deviennent alors accessibles pour l’analyse, la purification ou la valorisation. Présente sur la paillasse de la plupart des laboratoires de biologie, cette technique gagne aussi les bioprocédés, où elle doit concilier rendement, reproductibilité et respect des molécules fragiles. Principe physique, comportement des différents types de cellules, réglages du protocole, protection des biomolécules et passage au traitement en continu : voici plus d’informations à ce sujet.
La lyse cellulaire par ultrasons est une méthode physique de rupture des cellules. Une sonde vibrant à une fréquence de l’ordre de 20 kHz crée dans la suspension des bulles de cavitation dont l’implosion produit cisaillement, microjets et ondes de choc. Ces contraintes déchirent la paroi puis la membrane et libèrent le contenu cellulaire sans réactif chimique ajouté.
La lyse cellulaire par ultrasons, une rupture mécanique pilotée par la cavitation
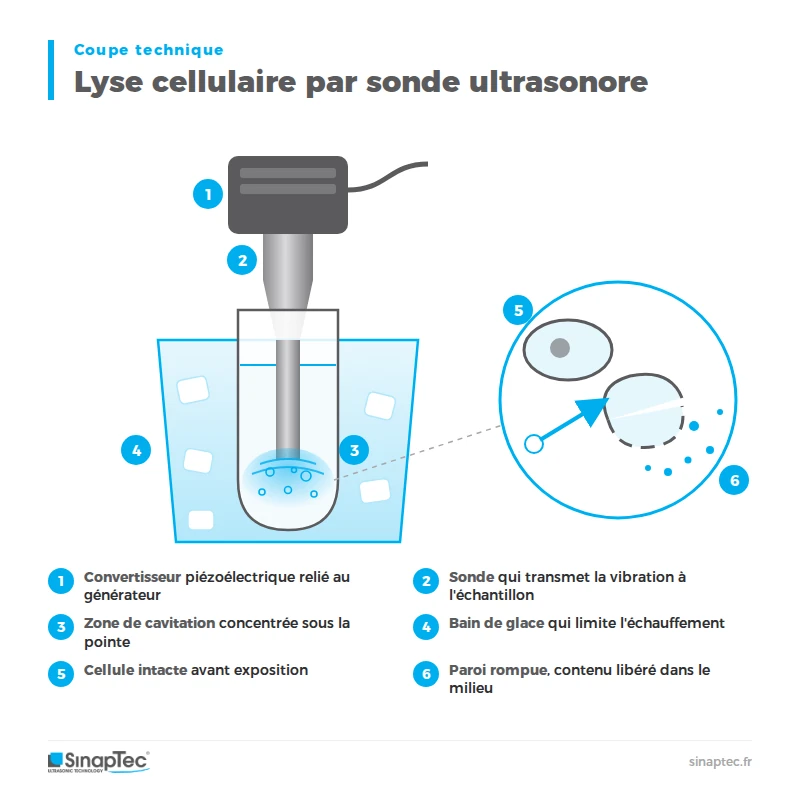
Pour récupérer une molécule synthétisée à l’intérieur d’une cellule, il faut d’abord franchir la barrière qui l’entoure : une simple membrane plasmique chez les cellules animales, une paroi rigide doublée d’une membrane chez les bactéries, les levures, les champignons et la plupart des microalgues. Les méthodes de rupture se répartissent en deux grandes familles, mécaniques et non mécaniques. La sonication appartient à la première : elle n’ajoute ni détergent ni enzyme et agit uniquement par l’énergie acoustique transmise au liquide. Concrètement, un générateur fournit un signal électrique haute fréquence, un transducteur piézoélectrique le convertit en vibration mécanique, puis une sonotrode plongée dans l’échantillon transmet cette vibration au milieu. Au laboratoire, cet ensemble prend le plus souvent la forme d’un homogénéisateur à ultrasons de laboratoire, utilisé aussi bien pour disperser des particules que pour lyser des cellules. L’intérêt de l’approche tient à sa souplesse : un même appareil traite un culot bactérien de quelques millilitres ou un échantillon plus volumineux, sans consommable spécifique, et l’intensité du traitement se règle finement d’un essai à l’autre.
Cavitation, cisaillement et ondes de choc
Tout part de la cavitation acoustique. Lorsque l’onde traverse le liquide, elle impose une alternance rapide de compressions et de dépressions ; pendant les phases de dépression, des microbulles naissent à partir des gaz dissous et des germes présents dans le milieu, grossissent sur plusieurs cycles, puis implosent brutalement. Cette implosion concentre en un point minuscule une énergie considérable : elle émet de puissantes ondes de pression et, lorsque la bulle s’effondre de façon asymétrique près d’une surface, projette des microjets de liquide à très grande vitesse. Autour des bulles qui oscillent sans imploser, des microcourants génèrent en outre un cisaillement local intense. Une cellule située au voisinage de ces événements subit donc des contraintes mécaniques répétées jusqu’à ce que son enveloppe se fissure. À ces effets physiques s’ajoute une composante chimique : la dissociation des molécules d’eau dans la bulle en fin d’implosion produit des radicaux hydroxyles et du peroxyde d’hydrogène, des oxydants puissants dont le rôle reste secondaire pour la rupture elle-même mais devient déterminant pour la qualité des molécules libérées. Quatre phénomènes se combinent ainsi autour de chaque bulle de cavitation :
- les ondes de choc émises à l’implosion, qui frappent les cellules proches ;
- les microjets, qui percutent les parois à grande vitesse ;
- le cisaillement par microcourants autour des bulles oscillantes ;
- la formation d’espèces oxydantes, qui attaquent lipides, protéines et acides nucléiques.
Une dégradation progressive, de la paroi vers la membrane
La rupture ne se produit pas d’un seul coup. Chez les organismes pourvus d’une paroi, c’est elle qui encaisse les premiers chocs : la cavitation commence par l’érosion de la paroi, qui se fragilise peu à peu avant que la membrane plasmique ne cède à son tour. Ce caractère progressif a une conséquence pratique : une sonication trop douce peut fragiliser l’enveloppe sans libérer les protéines d’intérêt. À l’échelle d’une population, la libération suit en outre une cinétique d’allure exponentielle, rapide au début puis de plus en plus lente, si bien que les derniers pourcentages de lyse coûtent beaucoup d’énergie. Enfin, la sonication fragmente l’acide désoxyribonucléique (ADN) chromosomique, ce qui fluidifie le lysat et évite souvent le recours à une nucléase, mais exclut cette méthode lorsque l’on cherche à conserver un ADN de haut poids moléculaire.
Pourquoi toutes les cellules ne cèdent-elles pas de la même façon ?
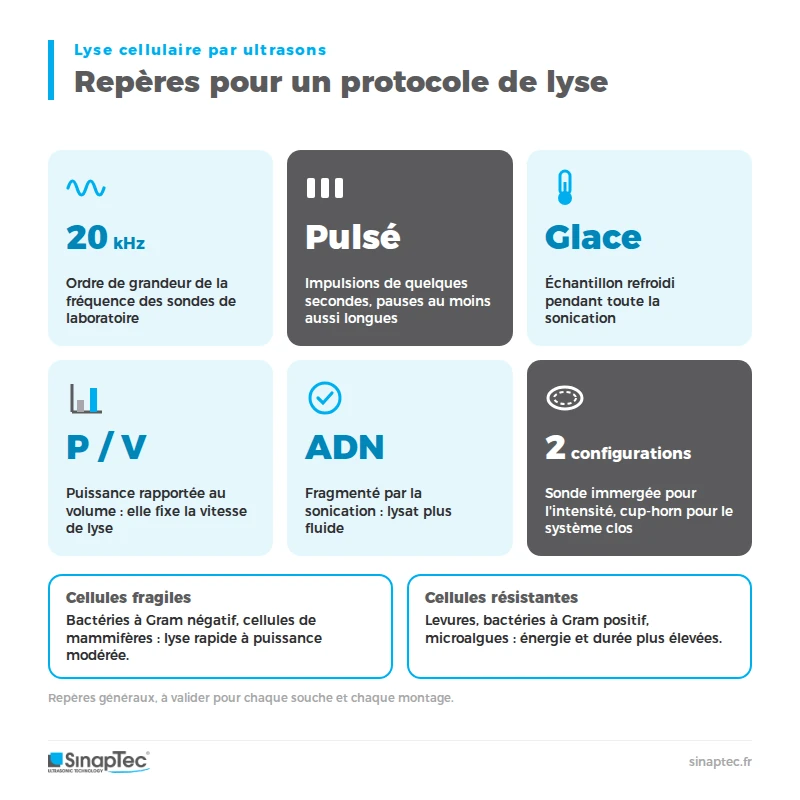
Deux suspensions traitées avec les mêmes réglages peuvent donner des résultats opposés, car la résistance d’une cellule dépend avant tout de l’architecture de son enveloppe : épaisseur et composition de la paroi, présence d’une membrane externe, taille, forme et tendance à s’agréger. Chez les bactéries, la distinction classique entre Gram négatif et Gram positif se révèle très parlante. Les bactéries à Gram négatif, comme Escherichia coli, possèdent une fine couche de peptidoglycane, épaisse de quelques nanomètres seulement et protégée par une membrane externe ; les bactéries à Gram positif portent au contraire une paroi de peptidoglycane bien plus épaisse et plus rigide, de plusieurs dizaines de nanomètres. Ces dernières résistent donc nettement mieux à la sonication. Les spores bactériennes, enfin, constituent un cas extrême de résistance mécanique, qui justifie fréquemment de combiner plusieurs méthodes. Ces écarts rappellent que maîtriser le principe de la sonication et ses applications ne dispense jamais de savoir à quel organisme on s’adresse avant de fixer une durée ou une intensité.
Les levures occupent une position intermédiaire, plus proche des organismes résistants. Leur paroi, faite de glucanes, de mannoprotéines et d’un peu de chitine, forme une coque épaisse qui absorbe une partie de l’énergie avant de céder. Pour Saccharomyces cerevisiae ou Komagataella phaffii (anciennement Pichia pastoris), deux hôtes courants de production de protéines, la sonication seule demande donc des durées plus longues qu’avec E. coli, et l’on associe volontiers une étape enzymatique préalable qui affaiblit la paroi. La composition du milieu compte également : une suspension trop dense, donc plus visqueuse, se prête moins bien à la cavitation. Il est donc utile de diluer raisonnablement la biomasse, même si une dilution excessive complique ensuite la purification en augmentant les volumes à traiter. Ce compromis entre efficacité de lyse et concentration du lysat se retrouve à toutes les échelles.
Les microalgues forment un groupe encore plus hétérogène, au point qu’aucune méthode de rupture ne convient à toutes les espèces. Certaines, comme Chlorella ou Nannochloropsis, possèdent une paroi polysaccharidique particulièrement robuste, parfois renforcée de biopolymères très résistants, qui en fait des cibles difficiles. D’autres, comme Dunaliella, dépourvue de paroi rigide, ou la spiruline, une cyanobactérie dont l’enveloppe s’apparente à celle des bactéries à Gram négatif, se lysent beaucoup plus facilement. Chez les microalgues, l’enjeu dépasse la simple rupture : on cherche à extraire des protéines, des pigments ou des lipides en préservant leur fonctionnalité, ce qui impose de doser l’énergie avec précision. À l’autre extrémité du spectre, les cellules de mammifères ne sont protégées que par leur membrane plasmique. Quelques impulsions brèves suffisent généralement à les ouvrir, et la sonication y sert surtout à cisailler l’ADN, à homogénéiser des extraits nucléaires ou à compléter une lyse par détergent doux. Dans ce cas, la priorité n’est plus la puissance mais la délicatesse du traitement. Du plus fragile au plus résistant, on peut retenir l’ordre usuel suivant, à moduler selon la souche et l’état physiologique des cellules :
- cellules animales et cellules d’insecte, dépourvues de paroi ;
- bactéries à Gram négatif et cyanobactéries ;
- bactéries à Gram positif et levures ;
- microalgues à paroi épaisse, champignons filamenteux et spores.
L’état physiologique pèse aussi dans la balance. Des cellules récoltées en phase stationnaire se montrent souvent plus résistantes que des cellules en croissance active, et certaines souches forment des agrégats qui se protègent mutuellement de la cavitation. À l’inverse, un cycle de congélation et de décongélation du culot fragilise l’enveloppe et raccourcit la sonication nécessaire. Ces facteurs expliquent qu’un protocole mis au point ailleurs ne se transpose jamais tel quel d’un laboratoire à l’autre : il doit être validé sur la souche, le milieu et l’appareil réellement utilisés. Menée méthodiquement sur quelques échantillons, cette étape de calage peut faire gagner beaucoup de temps par la suite.
Les paramètres qui gouvernent un protocole de sonication
Réussir une lyse, c’est délivrer à chaque cellule assez d’énergie pour rompre son enveloppe, sans en délivrer trop aux molécules que l’on veut récupérer. Plusieurs paramètres interviennent simultanément : l’amplitude de vibration de la sonde, la puissance réellement transmise, le volume et la concentration de l’échantillon, la durée totale, le rapport entre impulsions et pauses, la température et la géométrie du récipient. Ils ne sont pas indépendants, et modifier l’un d’eux sans ajuster les autres suffit à déplacer le résultat. Le raisonnement le plus robuste consiste à penser en termes d’énergie par unité de volume, puis à vérifier expérimentalement le degré de lyse et l’intégrité du produit. L’amplitude, qui fixe l’intensité de la cavitation sous la sonde, mérite à elle seule un développement détaillé ; l’accent est mis ici sur les réglages propres à la rupture des cellules et sur la façon de les combiner dans un protocole reproductible.
Puissance, volume et concentration de la suspension
La vitesse de lyse dépend d’abord de la puissance acoustique rapportée au volume traité. Autrement dit, doubler le volume sans augmenter la puissance ralentit la lyse, et une durée validée sur quelques millilitres ne vaut plus pour un échantillon dix fois plus gros. La puissance affichée par le générateur ne dit d’ailleurs pas tout : la part réellement transmise au liquide varie d’un montage à l’autre selon la sonde, le récipient et le niveau de remplissage. La viscosité du milieu joue également, car elle amortit la formation des bulles : un lysat riche en ADN non fragmenté ou une biomasse très concentrée perdent en efficacité. Enfin, le diamètre de la sonde doit être adapté au volume, et son extrémité immergée suffisamment profondément pour éviter la formation de mousse, sans toucher la paroi ni le fond du tube.
Mode pulsé et refroidissement
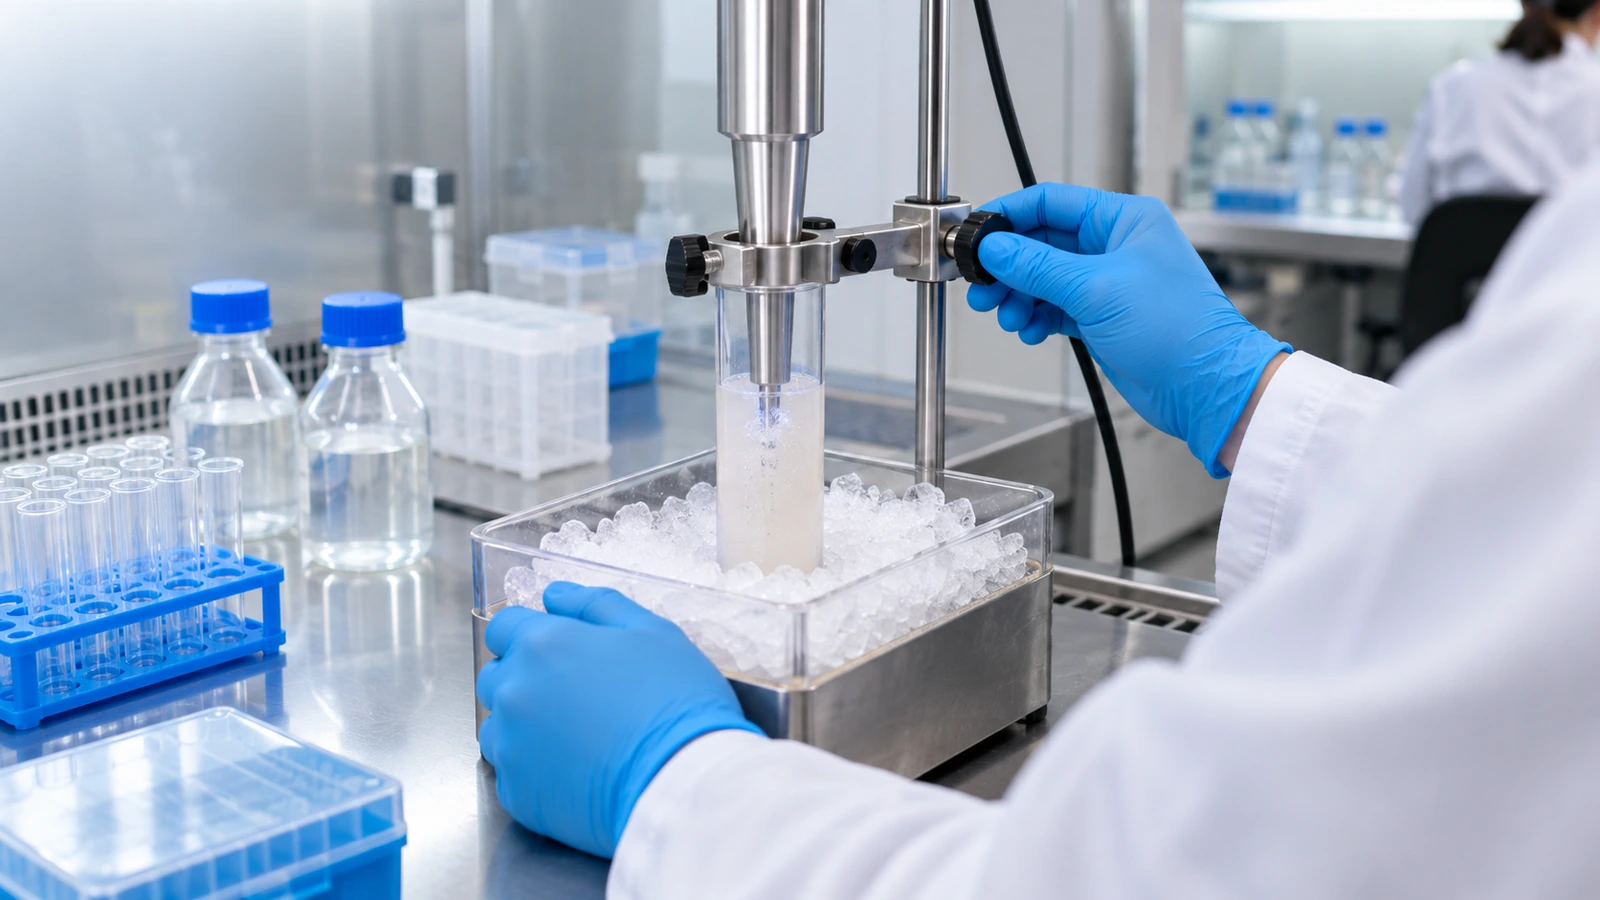
Presque toute l’énergie injectée finit par se dissiper en chaleur dans le liquide, et un petit volume s’échauffe très vite. C’est pourquoi la sonication des cellules se pratique en mode pulsé, avec des salves courtes séparées de pauses, pour que la chaleur puisse s’évacuer entre deux impulsions. En pratique, on alterne des impulsions de quelques secondes et des pauses au moins aussi longues. Le refroidissement passe généralement par un bain de glace, une enceinte à double enveloppe ou un support réfrigéré, et une sonde de température placée dans l’échantillon permet de vérifier que la consigne est tenue. Le rapport cyclique doit être choisi en fonction du volume : plus celui-ci est faible, plus les pauses doivent être longues. Un protocole de départ raisonnable, à affiner ensuite selon la souche, s’organise en cinq étapes :
- resuspendre le culot dans un tampon froid, additionné d’inhibiteurs de protéases si nécessaire ;
- placer le tube dans un bain de glace et immerger la sonde sans contact avec les parois ;
- appliquer des salves courtes en cycles pulsés, en surveillant la température ;
- contrôler le degré de lyse par microscopie, mesure de densité optique ou dosage des protéines ;
- centrifuger le lysat pour séparer les débris cellulaires de la fraction soluble.
Sonde immergée ou cup-horn : deux configurations complémentaires
Le choix de la configuration découle directement des mécanismes de la cavitation ultrasonore : la lyse se produit là où les bulles naissent et implosent, et nulle part ailleurs. La sonde immergée, ou sonication directe, délivre l’intensité la plus élevée, puisque la cavitation se développe au contact même de la suspension. Elle convient aux cellules résistantes et aux volumes allant du millilitre à plusieurs centaines de millilitres. Elle impose en revanche de nettoyer la sonde entre deux échantillons et expose à la formation d’aérosols, une contrainte réelle avec des micro-organismes pathogènes. Le cup-horn, ou sonication indirecte, place les tubes fermés dans un petit volume d’eau excité par le dessous : l’énergie traverse l’eau puis la paroi du tube avant d’atteindre les cellules. L’intensité est plus faible, mais le traitement se fait en système clos, sans contamination croisée et sur plusieurs échantillons en parallèle. Le rendement de cette configuration dépend fortement de la façon dont l’onde se propage et dont les bulles se forment dans l’eau du réservoir, ce qui explique pourquoi la position des tubes, le niveau d’eau et sa température modifient autant le résultat.
Préserver les biomolécules et changer d’échelle
Rompre les cellules n’est jamais une fin en soi : l’objectif reste d’obtenir une protéine active, un acide nucléique exploitable ou un extrait de qualité constante. La sonication présente ici un avantage réel, car elle n’introduit ni détergent ni enzyme qu’il faudrait éliminer ensuite, mais elle expose aussi les molécules libérées à la chaleur, aux espèces oxydantes et aux interfaces créées par la mousse. Ces risques se maîtrisent par des réglages adaptés. Le changement d’échelle soulève ensuite une autre question, celle de la répartition homogène de l’énergie dans des volumes croissants, qui conduit naturellement vers le traitement en continu. Les deux sujets sont liés : un procédé industriel n’a de sens que s’il reproduit, litre après litre, la qualité obtenue au laboratoire.
Échauffement, radicaux et dénaturation
Trois mécanismes menacent les biomolécules pendant la sonication. L’échauffement vient en premier : dès que la température grimpe, de nombreuses protéines se déplient et s’agrègent, tandis que les protéases libérées par la lyse deviennent plus actives. Les espèces réactives formées par la cavitation, radicaux hydroxyles et peroxyde d’hydrogène, peuvent ensuite oxyder certains acides aminés sensibles ou couper les chaînes d’ADN. La mousse, enfin, multiplie les interfaces air-liquide où les protéines se dénaturent. Aucune de ces menaces n’est pourtant une fatalité : le contrôle de la température, des impulsions courtes, une sonde bien immergée, l’ajout éventuel d’agents réducteurs et une durée limitée au strict nécessaire suffisent le plus souvent à préserver l’activité biologique.
Du tube au flux continu : extraction de protéines et microalgues
Au-delà de quelques centaines de millilitres, la sonication en lot atteint ses limites. La montée en échelle constitue alors le principal défi de la méthode : l’énergie acoustique s’atténue avec la distance, si bien que les cellules éloignées de la sonde sont moins bien traitées, et la viscosité accrue des suspensions concentrées freine la cavitation. La réponse la plus efficace consiste à inverser la logique : au lieu d’immerger une sonde dans un grand volume, on fait circuler la suspension à débit contrôlé dans une cellule de traitement en continu, de petit volume, où la cavitation est intense et homogène. Chaque élément de liquide reçoit alors la même dose d’énergie, le temps de séjour se règle par le débit, et une double enveloppe évacue la chaleur au plus près de la zone active. Plusieurs modules peuvent être placés en série pour augmenter la dose, ou en parallèle pour augmenter le débit. Cette configuration sert l’extraction de protéines recombinantes à partir de bactéries ou de levures, mais aussi la valorisation des microalgues, où l’on cherche à libérer protéines et pigments sans les dégrader. La comparaison avec les autres techniques doit cependant rester lucide : pour de grands volumes de biomasse concentrée, l’homogénéisation haute pression et le broyeur à billes demeurent les références industrielles. La sonication se justifie surtout lorsque sa souplesse de réglage, l’absence de réactif ou la possibilité de traiter des lots variés font la différence.
Le tableau suivant situe la sonication parmi les principales méthodes de rupture cellulaire utilisées en laboratoire et en production :
| Méthode | Principe | Points forts | Limites |
|---|---|---|---|
| Ultrasons | Cavitation, cisaillement et ondes de choc | Sans réactif, réglage fin, du tube au flux continu | Échauffement à maîtriser, radicaux, montée en échelle à concevoir |
| Homogénéisation haute pression | Passage forcé à travers une valve étroite | Standard industriel pour les bactéries et levures | Passes multiples, échauffement, peu adapté aux petits volumes |
| Broyeur à billes | Chocs et frottements entre billes agitées | Efficace sur les parois épaisses (levures, microalgues) | Usure, séparation des billes, fines particules de débris |
| Lyse enzymatique | Digestion ciblée de la paroi (lysozyme, glucanases) | Très douce, sélective | Coût des enzymes, lenteur, enzyme à éliminer ensuite |
| Lyse chimique | Détergents, solvants, bases ou agents chaotropes | Simple, sans équipement spécifique | Réactifs à retirer, risque de dénaturation, compatibilité aval |
Le choix final dépend du produit visé, de la souche, du volume et des étapes situées en aval. Dans bien des cas, la meilleure solution combine deux approches, par exemple une digestion enzymatique légère suivie d’une sonication courte, qui réduit à la fois la dose d’énergie et la quantité d’enzyme nécessaires. C’est précisément ce type d’arbitrage que nos équipes peuvent vous aider à évaluer, en mesurant sur banc d’essai le rendement de lyse, l’activité du produit et l’énergie consommée par litre traité.